La comunicazione acustica è un meccanismo fondamentale per molti animali, inclusi i mammiferi, e si basa sulla trasmissione di segnali sonori da un emittente a un ricevente, influenzandone il comportamento. Essa si distingue in informazione (struttura del segnale sonoro) e significato (risposta del ricevente).
Questa forma di comunicazione si è originata soprattutto in contesti dove la visibilità è limitata, come nell’ambiente marino, e si è evoluta grazie alla sua versatilità. Nei mammiferi marini è possibile grazie a strutture per la fonazione evolute e complesse, che consentono loro di arrangiare i suoni dando origine a delle vere e proprie sequenze acustiche.
Questo modo di comunicare, usato sia da molte specie sonifere terrestri, come uccelli e primati, che acquatiche, come i cetacei, permette il trasferimento di messaggi articolati in contesti legati alla riproduzione, alla disponibilità di risorse e ad eventuali minacce da parte di predatori.
Nei cetacei le sequenze acustiche sono state osservate in alcune specie di misticeti: un caso emblematico è quello delle canzoni prodotte dalla megattera e da alcune specie di odontoceti, come il tursiope.
Il termine “bray call” (letteralmente “raglio”), utilizzato per descrivere alcune vocalizzazioni dei tursiopi, deriva dalla somiglianza di questi suoni con il verso dell’asino. Si tratta di emissioni sonore a bassa frequenza (300 Hz – 2kHz) e di breve durata, a cui sono stati attribuiti nomi onomatopeici quali Gulp (GU), Grunt (GR), Squeak (SQ).
Grazie a uno studio condotto in Mediterraneo sono state identificate le varianti dei principali elementi bray (GU e GR), individuando 13 tipologie di sequenze stereotipate di bray call ed evidenziando la complessità strutturale di queste particolari vocalizzazioni. Infatti, le 13 sequenze di bray call possono essere suddivise in 3 livelli di complessità:
• Livello 1: emissione in sequenza dello stesso elemento acustico (es. sequenza 1);
• Livello 2: emissione in sequenza di due elementi acustici distinti (es. sequenza 7);
• Livello 3: emissione in sequenza di tre elementi acustici distinti (es. sequenza 9).
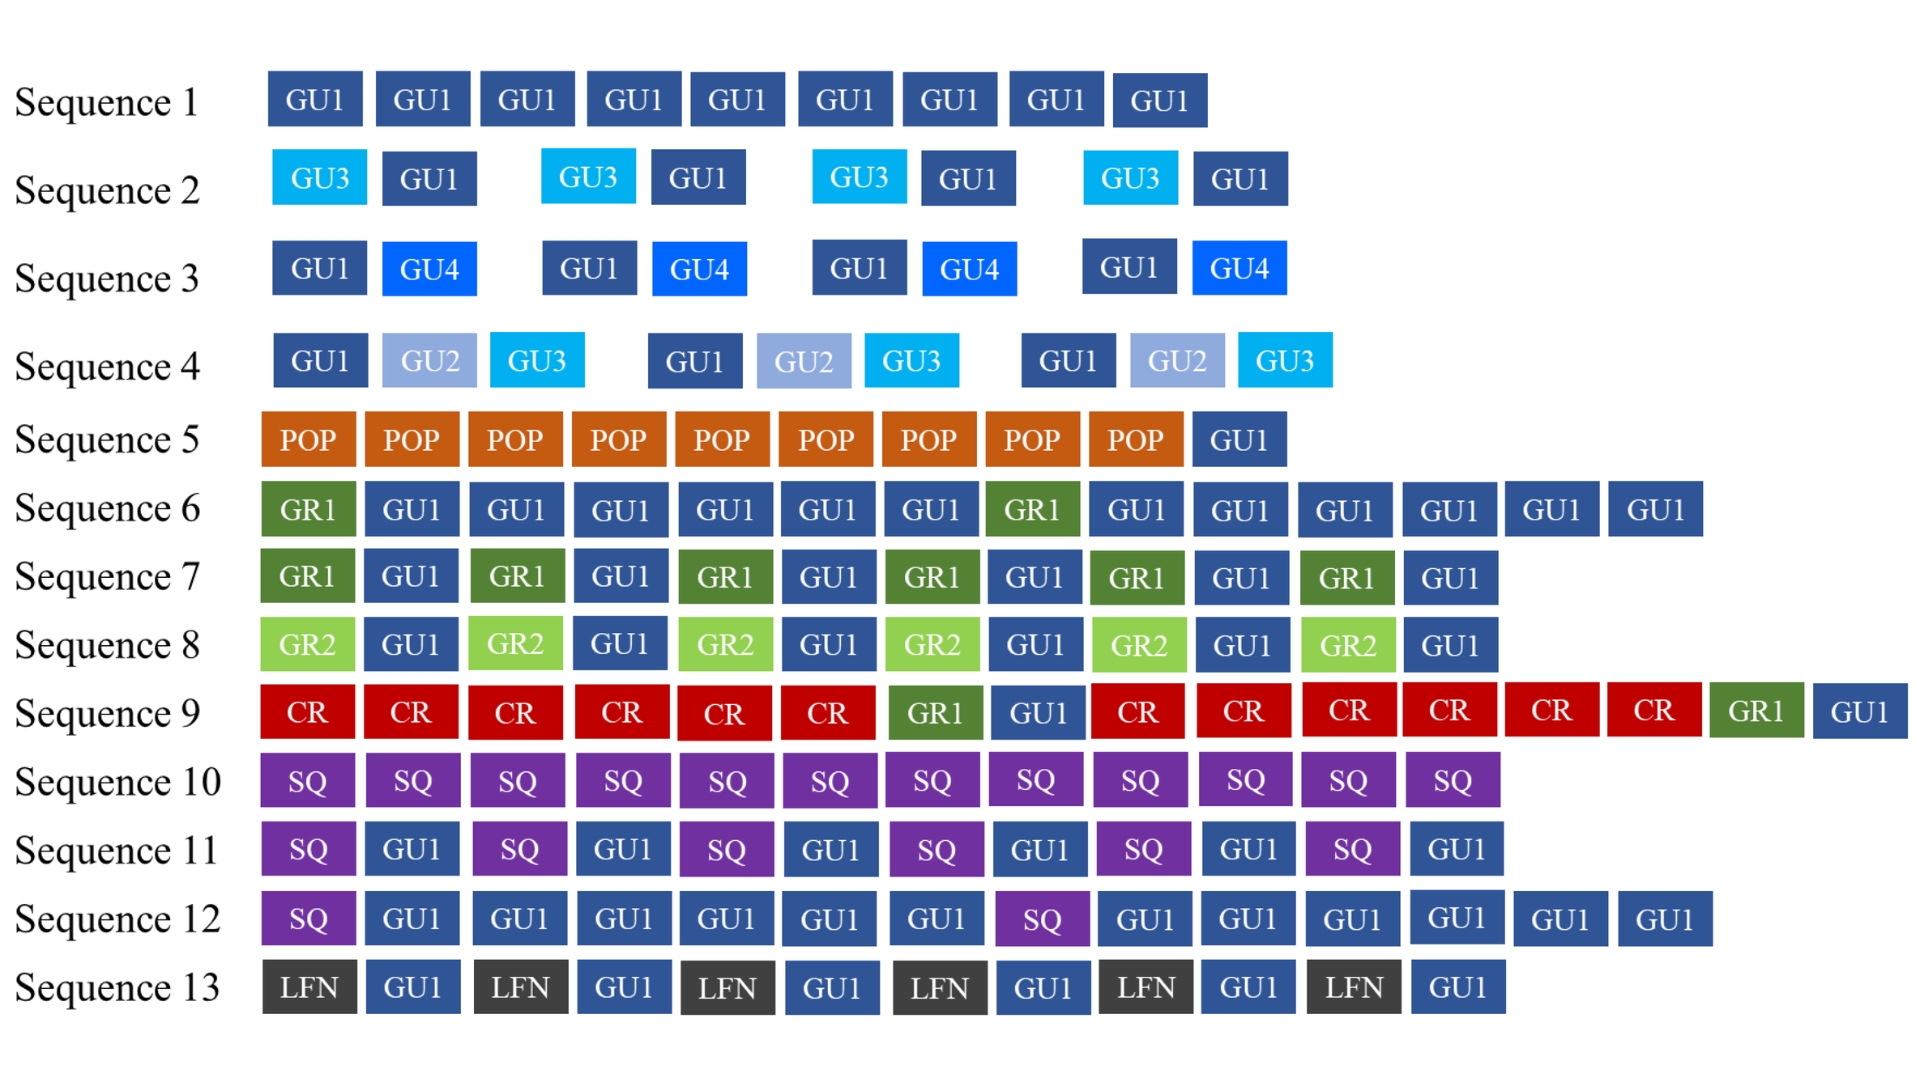
Immagine tratta da “Bray-Call Sequences in the Mediterranean Common Bottlenose Dolphin (Tursiops truncatus) Acoustic Repertoire” di Pace et al. (2022)
Le sequenze di Gulp di livello 1, costituite da un singolo elemento, risultano le più emesse, probabilmente per confermare, rafforzare o sostituire un messaggio, come osservato in altre specie terrestri, come lemuri (Lemur catta) e suricati (Suricata suricatta), e marine, come orche (Orcinus orca) e balenottere azzurre (Balaenoptera musculus). Tuttavia, è stata rilevata anche una frequente emissione di sequenze di livello 3, più complesse e multi-elemento, che sembrano avere un ruolo in contesti di corteggiamento, predazione, difesa e interazione sociale, analogamente a quanto osservato in altre specie come il merlo gracula (Quiscalus quiscula), la megattera (Megaptera novaeangliae), le scimmie di Campbell (Cercopithecus campbelli) e il pipistrello comune (Pipistrellus pipistrellus).
Le sequenze di bray call sono state registrate principalmente in contesti di socializzazione e alimentazione. Il loro tasso di emissione, infatti, aumenta in presenza di piccoli, in gruppi ristretti (<15 individui) e nei mesi successivi al fermo pesca, quando l’attività ittica viene messa in pausa per favorire il ripopolamento delle specie marine.
Nei tursiopi, in particolare, è stata osservata la capacità di più individui di emettere contemporaneamente sequenze di bray call. Questa emissione simultanea, detta overlap, tende a ridursi quando il numero di individui aumenta, suggerendo una strategia per ottimizzare la comunicazione. Questo comportamento è in linea con “l’ipotesi di evitamento delle interferenze”, già documentata in altre specie, come la cinciallegra (Parus major) e il pettirosso (Erithacus rubecola), dove la riduzione della sovrapposizione vocale favorisce una trasmissione più chiara dei segnali acustici. Ciononostante, la sequenza 1 viene frequentemente emessa in sovrapposizione con altre dello stesso tipo, suggerendo una possibile funzione sociale. Questo comportamento è simile a quello osservato nei capodogli (Physeter macrocephalus), in cui l’emissione in overlap delle “codas” (sequenze di Click stereotipate) contribuisce al rafforzamento dei legami di gruppo.
Foto via Canva
La complessità strutturale, la flessibilità in risposta a differenti contesti e l’elevata presenza di sovrapposizioni suggeriscono che queste vocalizzazioni possano avere un ruolo cruciale nella coesione sociale e nella coordinazione tra gli individui del gruppo, evidenziando ulteriormente la rilevanza della comunicazione acustica nelle dinamiche sociali dei tursiopi.
Sarebbe utile approfondire l’impatto determinato dalle attività umane sull’emissione delle sequenze di bray call, in quanto il rumore delle barche occupa lo stesso range di frequenza di espressione di queste ultime (0.2 – 1 kHz). I possibili effetti potrebbero essere:
• Il mascheramento che, come osservato nella balenottera comune (Balaenoptera physalus), può ridurre la fitness individuale dell’animale, ovvero la sua capacità di sopravvivenza e di riproduzione. Per evitare che la propria frequenza di comunicazione sia infatti sovrastata dai suoni esterni, gli animali modificano le proprie emissioni sonore abbassando o alzando le frequenze. Questo adattamento comporta un maggiore investimento energetico, necessario per spostare i range di frequenza e mantenere la comunicazione efficace;
• l’interruzione che, come osservato nella megattera (Megaptera novaeangliae), può influire negativamente sul potenziale riproduttivo della specie. Quando il canto del maschio viene interrotto, infatti, si arresta anche il processo di attrazione esercitato verso le femmine, compromettendo le opportunità di accoppiamento e, di conseguenza, la capacità riproduttiva della popolazione.
Approfondire la conoscenza di questi sistemi di comunicazione ci permette di comprendere meglio le esigenze ecologiche dei cetacei, per salvaguardare le specie e intraprendere misure di riduzione delle attività umane che possono determinare un impatto negativo su di esse.
Foto via Canva
• Budenz, T., Heib, S., Kusch, J. (2009). “Functions of bat social calls: the influence of local abundance, interspecific interactions and season on the production of pipistrelle (Pipistrellus pipistrellus) type D social calls”. Acta Chiropterologica, 11(1): 173–182.
• Chen, Z., & Wiens, J. J. (2020). “The origins of acoustic communication in vertebrates”. Nature Communications, 11(1).
• Connor, R.C., Smolker, R.A. (1996). “’Pop’ goes the dolphin: a vocalization male bottlenose dolphin produced during courtships”. Behaviour, 133, 643–662.
• Dos Santos, M.E., Caporin, G., Moreira, H.O., Ferreira, A.J., Coelho, J.L.B. (1990). “Acoustic behaviour in a local population of bottlenose dolphins”. In: Thomas J, Kastelstein R, editors. Sensory abilities of cetaceans. New York (NY): Plenum Press; p. 585–598.
• Ficken, R. W., Ficken, M. S., & Hailman, J. P. (1974). “Temporal pattern shifts to avoid acoustic interference in singing birds”. Science, 183(4126), 762-763.
• Foote, A.D., Osborne, R.W. & Hoelzel, A.R. (2004). “Whale-call response to masking boat noise”. Nature 428, 910.
• Fournet, M.E., Matthews, L.P., Gabriele, C.M., Haver, S., Mellinger, D.K. & Klinck, H. (2018). “Humpback whales Megaptera novaeangliae alter calling behavior in response to natural sounds and vessel noise”. Marine Ecology Progress Series. 607, 251-268.
• Herzing, D.L. (1996). “Vocalizations and associated underwater behaviours of free-ranging Atlantic spotted dolphins, Stenella frontalis and bottlenose dolphins, Tursiops truncatus”. Aquatic Mammals. 22:61–79.
• Macedonai, J.M. (1990). “What is communicated in the antipredator calls of lemurs: evidence from playback experiments with ringtailed and ruffed lemurs”. Ethology 86, 177–190.
• Manser, M.B. (2001). “The acoustic structure of suricates’ alarm calls varies with predator type and the level of response urgency”. Proceedings of the Royal Society of London Series B: Biological Sciences 268, 2315–2324.
• Miller, P.J.O., Biassoni, N., Samuels, A. & Tyack, P.L. (2000). “Whale songs lengthen in response to sonar”. Nature 405, 903.
• Ouattara, K., Lemasson, A., Zuberbühler, K., (2009). “Campbell’s monkeys concatenate vocalizations into context-specific call sequences”. National Academy of Sciences, 106(51): 22026-22031.
• Pace, D.S., Tumino, C., Silvestri, M., Giacomini, G., Pedrazzi, G., Pavan, G., Papale, E., Ceraulo, M., Buscaino, G., Ardizzone, G. (2022) “Bray-Call Sequences in the Mediterranean Common Bottlenose Dolphin (Tursiops truncatus) Acoustic Repertoire”. Biology, 11, 367.
• Payne, R.S. & McVay, S. (1971). “Songs of Humpback Whales: Humpbacks emit sounds in long, predictable patterns ranging over frequencies audible to humans”. Science, 173(3997), 585–597.
• Schulz, T.M., Whitehead, H., Gero, S. & Rendell, L. (2008). “Overlapping and matching of codas in vocal interactions between sperm whales: insights into communication function”. Animal Behaviour 76, 1977–1988.
• Searcy, W.A. (1992). “Song repertoire and mate choice in birds”. American Zoologist. 32:71–80.


Ocean Facts
Autrice: Ingrid Ravasi


Ocean Facts
Autrice: Graziella Pillari


Ocean Facts
Autrice: Emily Tanganelli